Mention de rédaction et traduction par IA
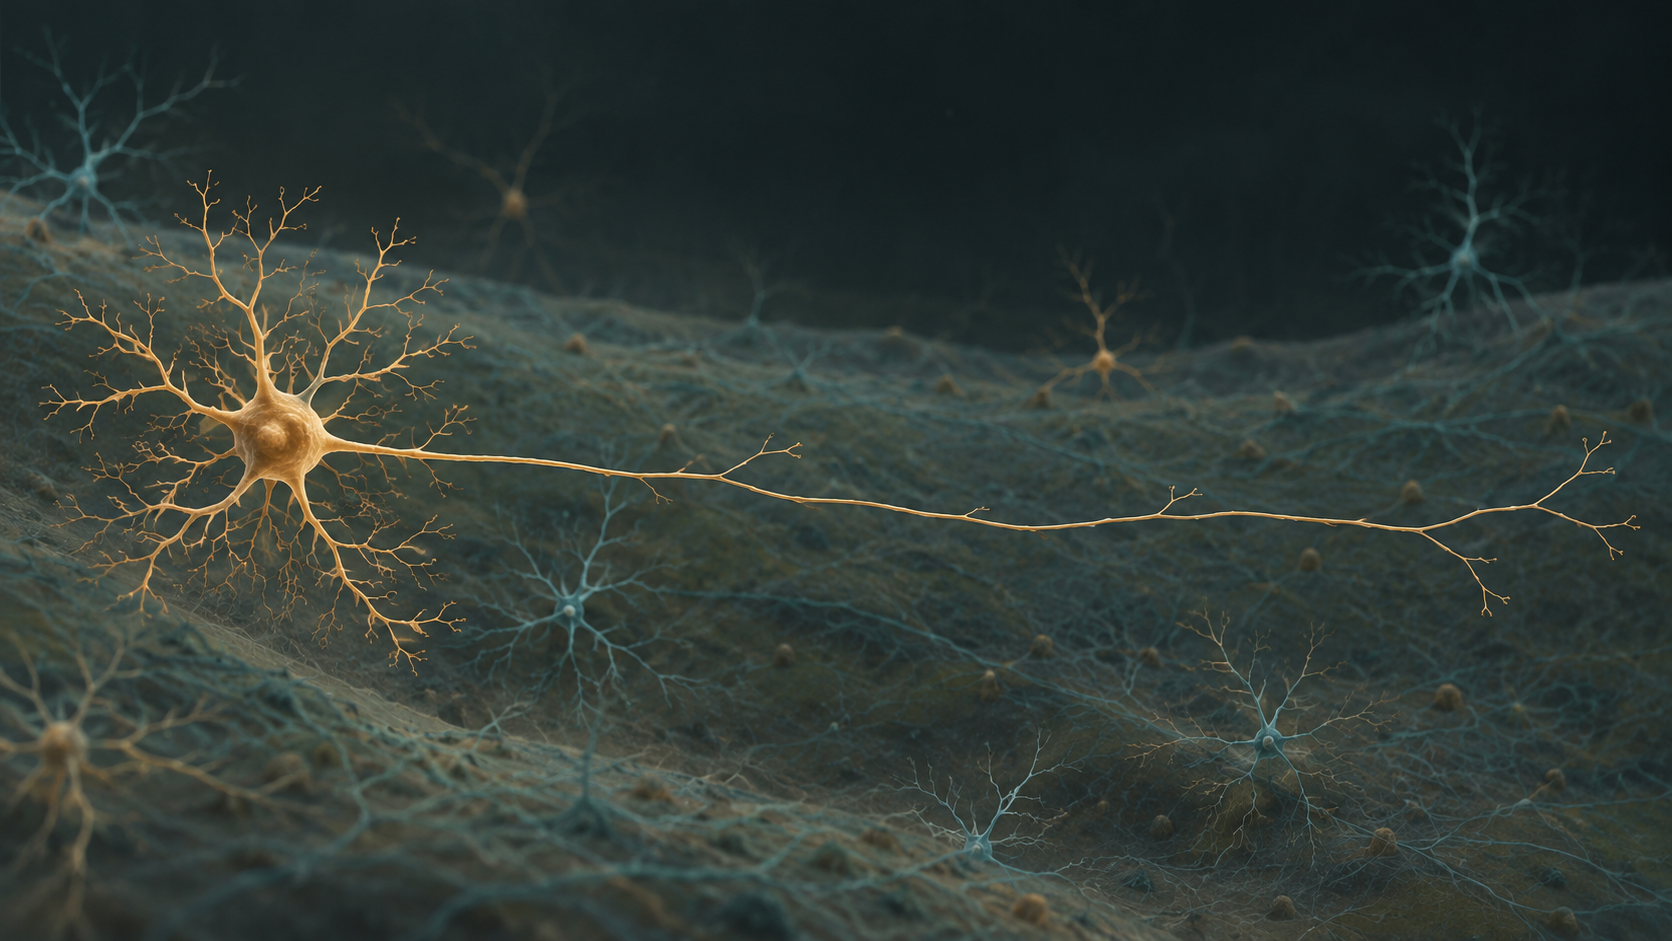
Maintenance — 7 octobre 2026. La couverture a été remplacée car son fichier original et son reçu de génération n’ont pas pu être retrouvés dans les accès disponibles. Le remplacement a été reçu de l’outil natif d’image puis inspecté visuellement ; son fichier, sa consigne et ses références sont conservés dans le dossier éditorial privé. L’ancienne couverture et sa provenance non vérifiée restent dans l’historique. Il s’agit d’une illustration, pas d’une preuve expérimentale ; le résultat scientifique central est conservé.
Note de maintenance — 6 octobre 2026. Cette mise à jour précise le critère de sélection et la fenêtre d’observation de l’expérience sur le sommeil, ainsi que l’accès aux données des figures, aux données brutes et aux scripts propres au projet. La conclusion reste une suffisance chez la souris, sans établir une nécessité ni un traitement humain. La prépublication n’a pas pu être relue pendant ce passage.
Mécanisme conceptuel assemblé à partir des expériences citées. Illustration conceptuelle générée par IA. Couleurs conventionnelles ; sans échelle. Ni microscopie ni données expérimentales.
1. Ce qui change
Le sommeil est souvent expliqué du bas vers le haut : des circuits de l’hypothalamus, du tronc cérébral et du prosencéphale basal changent l’état du cortex. Ratliff et ses collègues ajoutent une voie complémentaire. Chez la souris, un sous-ensemble défini de neurones à somatostatine exprimant la chondrolectine — les cellules Sst-Chodl — peut inhiber des cibles sur plusieurs millimètres de néocortex et contribuer à synchroniser l’activité lente.
L’avancée tient à la combinaison de l’anatomie, de l’enregistrement et de la perturbation. Les auteurs n’ont pas seulement trouvé un signal corrélé au sommeil : ils ont reconstruit les axones, mesuré l’activité selon l’état comportemental, testé les synapses en coupe et activé les cellules chez l’animal vivant. L’ensemble soutient une conclusion causale bornée : l’activation de cette population suffit à favoriser la synchronisation corticale et davantage de sommeil chez les souris testées.
2. Une cellule rare aux axones exceptionnellement longs
La plupart des interneurones inhibiteurs corticaux agissent localement. Les cellules Sst-Chodl font exception : elles représentent moins de 1 % des neurones GABAergiques corticaux et envoient des axones ipsilatéraux dans plusieurs aires. Seize cellules Sst-Chodl reconstruites chez trois souris présentaient des projections millimétriques, contrairement aux cellules comparatrices locales. « Longue portée » signifie ici longue au sein d’un hémisphère de souris, pas à travers tout le cerveau.
3. Observations et tests causaux
L’imagerie calcique biphotonique a relié les cellules marquées aux changements spontanés d’état. Dans les couches superficielles, 95 des 111 cellules marquées de 15 souris étaient plus actives pendant l’éveil calme ou le sommeil lent ; 16 montraient le profil opposé, probablement des cellules hors cible ou minoritaires. En profondeur, 14 des 16 cellules de cinq souris suivaient le profil de faible éveil. Leur activité montait avant les états corticaux DOWN et suivait la bande delta de 1 à 4 Hz, mais la régression n’a pas montré qu’elle prédisait les variations delta ultérieures.
L’activation optogénétique a accru la puissance basse fréquence et la synchronie corticale pour des séparations d’environ 2 à 6 mm, avec un effet plus faible à distance. En coupe, 156 cellules enregistrées chez 16 souris ont révélé des cibles répondant encore à environ 2 mm du site d’injection. La gabazine bloquait les réponses ; la tétrodotoxine associée à la 4-aminopyridine étayait une connexion GABAergique monosynaptique. Dans le cerveau intact, une propagation polysynaptique par les voies corticocorticales ordinaires n’est pas exclue.
L’activation chimiogénétique employait des DREADD et de la clozapine-N-oxyde (0,5 mg kg⁻¹). Pendant la phase claire, 14 souris ont passé davantage de temps en sommeil lent et paradoxal, moins de temps éveillées et se sont endormies plus vite (latence P = 0,003). Le nombre d’épisodes de sommeil lent augmentait (P = 0,036), mais leur durée moyenne ne différait pas significativement (P = 0,110). Les témoins sans DREADD n’ont pas montré le même changement. Une expérience en phase sombre totalisait 12 sessions chez six souris et augmentait aussi le sommeil lent tout en réduisant la latence.
Seules les souris éveillées pendant au moins 60 % du temps des sessions avec véhicule (témoin salin) étaient incluses dans chaque phase analysée. Le sommeil était suivi pendant les 2 h après l’injection ; les sessions avec véhicule et avec substance activatrice étaient appariées, le traitement initial était contrebalancé et la cotation du sommeil était réalisée en aveugle des conditions de stimulation. Le résultat est donc limité à cet échantillon sélectionné et à cette fenêtre d’observation.
4. Lire les nombres
Les fractions suivantes sont des recalculs transparents des effectifs publiés, pas de nouvelles mesures biologiques. Pour k cellules parmi n, p = k/n. Ainsi, 95/111 = 0,856, soit 85,6 %, et 14/16 = 0,875, soit 87,5 %. Le petit échantillon profond implique une incertitude d’échantillonnage beaucoup plus large : ces pourcentages ne sont pas des taux précis de population.
p=nk
11195=0.856(85.6%)
1614=0.875(87.5%)
| Mesure | Base publiée | Interprétation bornée |
|---|---|---|
| Cellules superficielles de faible éveil | 95/111 cellules ; 15 souris | 85,6 % des cellules marquées de cet échantillon |
| Cellules profondes de faible éveil | 14/16 cellules ; 5 souris | 87,5 % ; petit échantillon |
| Enregistrements en coupe | 156 cellules ; 16 souris | Réponses GABAergiques à longue portée, dont ~2 mm |
| DREADD en phase claire | 14 souris ; CNO 0,5 mg kg⁻¹ | Plus de sommeil lent/paradoxal, latence réduite |
| DREADD en phase sombre | 12 sessions ; 6 souris | Plus de sommeil lent, latence réduite |
La puissance delta peut être représentée conceptuellement par l’intégrale du spectre entre 1 et 4 Hz ; l’article source doit être consulté pour l’estimateur expérimental exact.
Pδ=∫1Hz4HzSxx(f)df
5. Ce que le résultat signifie — et ne signifie pas
Le travail démontre une suffisance : une activation forcée peut orienter le système vers la synchronisation et le sommeil. Il ne démontre ni que ces cellules sont nécessaires au sommeil normal, ni qu’une intervention identique fonctionnerait chez l’humain, ni que le cortex agit seul. Les animaux sont des souris, les effectifs varient selon l’expérience, le ciblage cellulaire est imparfait, et les auteurs laissent à de futurs travaux les entrées amont, les rôles hors cortex sensoriel et les liens avec hypothalamus ou mésencéphale. L’association avec l’activité delta était contemporaine, pas prédictive.
6. Reproductibilité et prochaines questions
La version finale de Nature, publiée le 9 septembre 2026, est en accès ouvert et fournit des méthodes détaillées et les données sous-jacentes aux figures. Les jeux complets de données brutes sont disponibles auprès des auteurs correspondants sur demande raisonnable. Les scripts d’analyse personnalisés à usage général sont publics dans le dépôt des auteurs. Les scripts supplémentaires propres au projet sont disponibles sur demande et peuvent nécessiter l’aide des auteurs. La disponibilité se distingue de l’analyse de ces données, de l’exécution de ces scripts et de la reproduction des expériences ; aucune de ces opérations n’a été réalisée dans cette revue de maintenance.
La prépublication bioRxiv documente une version antérieure de la même étude. Son texte complet n’a pas pu être relu pendant ce passage de maintenance ; sa version exacte n’est donc pas certifiée ici. Elle reste une référence d’historique, pas une corroboration indépendante ; les contrôles scientifiques de ce passage reposent sur le HTML final de Nature et ses méthodes.
Les prochaines expériences les plus informatives sont l’inactivation, l’enregistrement hors cortex sensoriel, la cartographie des partenaires amont et sous-corticaux et la réplication chez d’autres mammifères.
7. Sources
- Ratliff, J. M., Terral, G., Vazquez, A. et al. « Neocortical long-range inhibition promotes cortical synchrony and sleep ». Nature, publication le 9 septembre 2026. DOI : 10.1038/s41586-026-10876-y.
- Prépublication bioRxiv, version antérieure de la même étude, DOI 10.1101/2024.06.20.599756
8. Méthode éditoriale News
Article rédigé et traduit par un système d’IA à partir des sources citées, avec contrôles automatisés selon la méthode éditoriale News. Aucune expertise humaine n’est revendiquée.