差异不再显现,并不等于已经丢失
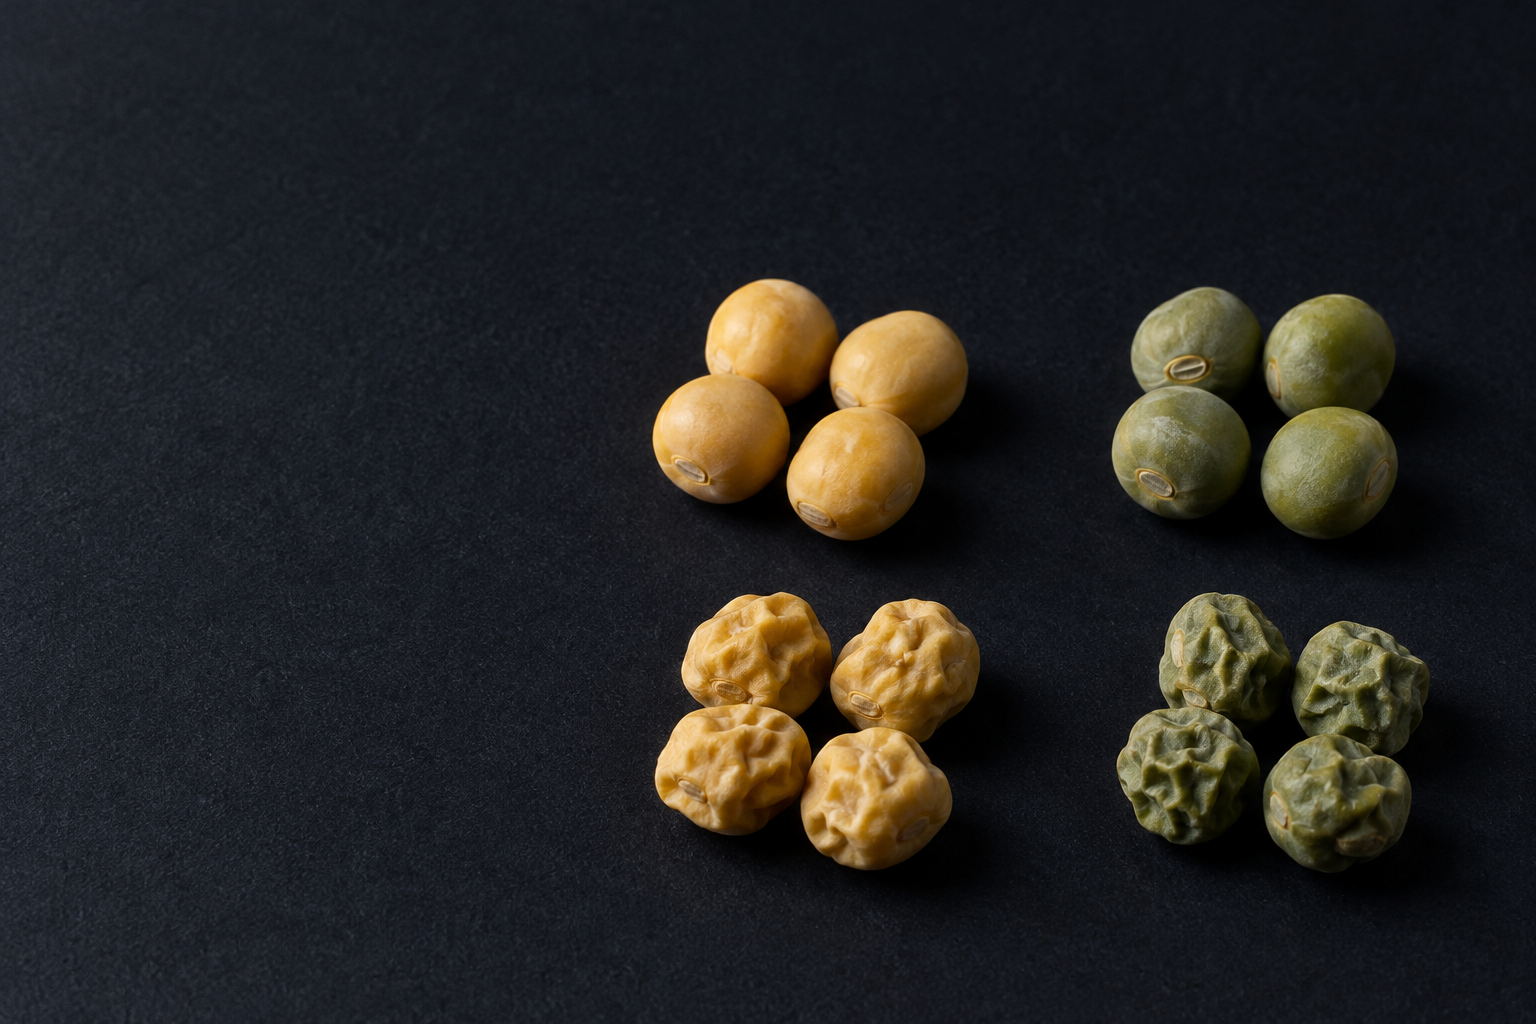
将一种稳定产生圆粒种子的豌豆与一种稳定产生皱粒种子的豌豆杂交。第一代杂交后代的种子可能全部呈圆形。皱粒的性状是否消失了?孟德尔追踪了后代,发现它又重新出现。
关键在于区分生物表现出来的样子与它能够传递给后代的内容。产生圆粒种子的杂交植株与稳定产生圆粒种子的纯系植株,外观可能相同,后代却可能不同。仅凭外观无法将它们区分开来,再追踪一代则可以。
这是研究遗传方式的进步。孟德尔没有停留于描述杂交后代整体上有多像亲本,而是将可识别的差异分别研究,对后代计数,并比较不同世代。他在论文引言中承认了此前杂交研究者的贡献;植物杂交并不是他发明的。孟德尔原论文。
孟德尔于1865年2月8日和3月8日在布吕恩——今天的布尔诺——举行的学会会议上报告了研究。学会刊物的这一卷标为1865年度,但论文于1866年印行,刊于第3–47页。报告日期与发表日期并不相同。德文重印本中的出版信息。
为什么豌豆让问题变得可研究
孟德尔需要能正常繁殖、差异可一致分类、授粉又能受到控制的植物。豌豆适合这一目的,因为它的花通常保护着生殖器官,而且容易自花受精。通过有意进行的杂交,他能够将已知亲本与随后几代后代联系起来。
他报告说,自己用两年时间测试了34个品种,选出其中22个用于杂交。在主要实验中,他选取了七种界限清楚的性状。只能描述为“较多”或“较少”的差异,不适合这些按单独性状分别计数的实验。这种选择使分析更清晰,也限制了研究能够直接检验的变异类型。
下表是孟德尔发表的杂交植株后代的观察计数——这一代今天通常称为F2。前两行的计数对象是种子,其余各行的对象是植株。不能将它们合并成一个“独立接受实验的植株总数”。
| 性状 | 显性外观:报告计数 | 隐性外观:报告计数 | 计数对象 |
|---|---|---|---|
| 成熟种子的形状 | 圆形或近圆形:5,474 | 有棱角且皱缩:1,850 | 7,324粒种子,来自253株杂交植株 |
| 种子内部的颜色 | 黄色:6,022 | 绿色:2,001 | 8,023粒种子,来自258株植株 |
| 种皮颜色及与之相关的花色 | 有色种皮、紫红色花:705 | 白色种皮、白色花:224 | 929株植株 |
| 成熟豆荚的形状 | 饱满膨胀:882 | 有缢缩:299 | 1,181株植株 |
| 未成熟豆荚的颜色 | 绿色:428 | 黄色:152 | 580株植株 |
| 花的位置 | 沿茎分布:651 | 位于顶部:207 | 858株植株 |
| 茎的长度 | 长:787 | 短:277 | 1,064株植株 |
来源是原论文中的七组单性状实验。旧文本用“albumen”指称种子内部;英文版本说明,这里指的是豌豆子叶,即种子的叶状结构。花色观察与种皮性状相联系,并不是额外的第八组实验。德文文本、英文译本。
这些计数中,显性外观与隐性外观的数量之比接近三比一,但并不恰好等于三比一。在种子形状实验中,7,324粒种子里有1,850粒皱粒,约占25.26%。在同样的总数下,三比一模型给出的皱粒期望数为1,831粒,与观察数相差19粒。这是对发表的汇总数据进行的算术比较,不是新的实验结果,也不是对历史数据真实性的统计认证。
从外观到机制
用现代解释性记号表示,设A和a是一种基因的两个版本,即等位基因。AA和aa表示拥有两个相同版本的植株,Aa表示拥有两个不同版本的植株。在这个例子中,假设A在AA和Aa中都使种子呈圆形。因此,所谓显性等位基因,是指在这种配对中,其对应外观能够表现出来的等位基因。“显性”并不意味着更常见或更有价值。
假设Aa杂交植株向一个生殖细胞传递A或a的概率相同。如果卵细胞与花粉贡献的遗传内容随机结合,四种等可能的配对给出:
P(AA)=41,P(Aa)=21,P(aa)=41.
内在组合的比例为1:2:1。当AA和Aa外观相同时,可见的类别便合并为3:1。因此,模型预测圆粒后代中有三分之一为AA、三分之二为Aa。这是两种不同的预测,可以通过培育它们的后代来检验。
孟德尔进行了这样的后续实验。他报告说,在由圆粒种子培育的565株植株中,193株只产生圆粒种子,372株同时产生圆粒和皱粒种子。这提供了超出单一外观比例的证据。现代的AA/Aa/aa记号解释了其中的逻辑;孟德尔自己的公式用A和a表示恒定类型,用Aa表示杂交类型。因此,不应将这套记号误解为他发现了DNA,或给出了基因的分子层面描述。原实验及其推理。
两种性状,以及概率相乘的前提
同时追踪种子形状和种子内部颜色,会出现什么情况?孟德尔报告了来自15株杂交植株的556粒种子:圆黄315粒、皱黄101粒、圆绿108粒、皱绿32粒。
如果每种性状的外观比例均为3:1,且两种性状独立遗传,概率相乘便能给出预测。这里R表示圆形,Y表示黄色。
P(R,Y)=43×43=169.
于是,四种外观类别的期望比例为9:3:3:1。对于556粒种子,按上述报告观察值的相同顺序,期望计数分别是312.75、104.25、104.25和34.75。带小数的期望数描述的是多次重复的平均,而不是一次实际收获中存在小数粒种子。
独立性是一项前提,并不是乘法本身能够证明的结论。在现代遗传学中,同一条染色体上相邻的基因可能一起遗传,因为重组并不总能将它们分开。这种连锁能够改变双性状比例,即使单个基因仍在发生分离。因此,1866年的豌豆实验并不能支持“所有成对的遗传差异都彼此独立”这一说法。孟德尔的双性状实验、NHGRI对连锁的解释。
孟德尔还通过杂交植株与亲本类型之间的交配检验了自己的解释。与两种性状均为隐性的亲本交配时,模型预测会出现数量大致相等的四种外观类别。他报告的种子数为:由杂交植株提供卵细胞时,31、26、27和26粒;由其提供花粉时,24、25、22和27粒。改变交配方式是在检验解释所推导出的结果,而不只是重新数一遍原实验。生殖细胞实验。
这项工作为什么成为历史转折点
孟德尔提供了一个框架:一种可遗传的差异可以在不可见时仍然存在,在生殖细胞形成时分离,再在后代中重新组合。这让遗传能够接受数量预测和具有区分作用的交配实验的检验。
它在科学中的更广泛地位是在后来形成的。1900年前后的重新关注扩大了这项工作的影响;人们熟悉的“重新发现”这一说法,不应让人以为孟德尔的论文从未传播,或者后续历史只有一次事件。美国国家人类基因组研究所(NHGRI)将他的实验列为现代遗传学的基础,并记录了1900年对该研究的重新关注。NHGRI关于孟德尔的介绍、NHGRI历史时间线。
后续发现为遗传补上了物理层面和人类研究的背景。萨顿将减数分裂——产生生殖细胞的细胞分裂——中染色体的行为与分离模式联系起来;该研究所的时间线将他的观察记为1902年,将其更明确的染色体论证记为1903年。1902年,加罗德用孟德尔遗传解释了尿黑酸尿症在家族中的发生情况。这些是后来的发展,不是孟德尔论文中进行的实验。遗传的染色体理论、对尿黑酸尿症的历史性应用。
持久的变化,是一种通过可检验的预测将不可见的遗传组成与观察相联系的方法。它成为遗传学的一部分,而不是对所有生物学差异的完整解释。NHGRI明确提醒,许多性状的遗传比单基因显性—隐性模式复杂得多。
方法与核验
问题与比较。 孟德尔探究的是,可区分的亲本性状如何在连续几代杂交后代中重新出现。比较包括杂交植株的自花受精、后续后代,以及每种亲本类型均可分别提供花粉或卵细胞的正反交实验。以下细节是1866年论文的报告内容,并已在可获取的版本中核对;本文并未重复这些实验。
材料与对照。 论文描述了园地中的种植畦和部分盆栽、植株支架、用于处理花的镊子、受控的花粉转移,以及用于检查潜在昆虫干扰的温室植株。研究有意选择生长旺盛的植株。在茎长实验中,为避免高株抑制矮株,将矮株移到另一个种植畦。这些是有关的对照和选择决策,不是关于现代随机化或盲法的报告。
观察与损失。 在适用的情况下,分类对象是成熟、干燥的种子。孟德尔记录了绿色表现较弱、种子受损、偶尔发生的非预期授粉,以及未能萌发或繁殖等情况。例如,在双性状后续实验中,556粒种子并没有全部成为能够结实的植株。缺失的观察应当明确保留,不能悄悄用理想比例替代。
数据与范围。 所查阅的论文包含汇总计数和部分植株层面的实例,而不是覆盖每一株植物、环境与评分决策的完整现代数据集。这些来源未能确立足以在今天获得相同材料的原始种质精确标识、全面的环境测量、随机化安排、盲法分类记录及原始笔记。本资料集缺少这些信息,限制了按原样重建实验的可能性;但这并不会抹去已报告的观察。
这里核验了什么。 文中显示的总数、分数、期望计数以及现代的四种配对解释,使用只依赖标准库的一段简短原创Python脚本重新计算过。这核验的是已发表汇总数据和解释模型的算术。未执行第三方研究代码。未进行植物实验、分子检测或独立的生物学重复验证。
如何考察解释。 首先核对计数及其单位,然后列明假设:两个等位基因以相同概率传递、随机组合、在所评定的外观上完全显性,以及各类别具有可比较的存活和检出情况。对于两种性状,还需要加入独立性。将观察类别与预测比较,保留失败和有歧义的分类,再考察另一种交配或下一代。仅与一个比例相符,不能确定所有潜在机制。新的实物实验需要自己的材料、方案和对照。
时间、成本与局限。 孟德尔描述了为期八年的研究和最初为期两年的品种试验;本文并不将这两个时长相加,视为先后两个独立时期。没有确立可靠的货币成本。统计不确定性、种子在植株内成簇,以及分类决策,都使我们不能把7,324粒种子当作7,324株分别独立随机化的植株。没有采用虚构的置信区间或接受阈值。
孟德尔本人在结尾要求重复重要实验,并对其他植物类群进行检验。他在其他植物上的实验出现了繁殖能力有限和颜色结果模糊的情况,并将这些结果与更清晰的豌豆结果区分开来。观察、解释与假设之间的边界,与那些熟悉的比例一样,都是这项历史贡献的一部分。
来源与编辑说明
科学参考文献是格雷戈尔·孟德尔的《Versuche über Pflanzen-Hybriden》,发表于《Verhandlungen des naturforschenden Vereines in Brünn》1865年度第IV卷,1866年出版,第3–47页。所查阅的可获取德文文本收录于埃里希·冯·切尔马克编的第二版,1911年莱比锡出版,是原论文的后出版本。MendelWeb英文版源于威廉·贝特森1901年的翻译,并作了编辑修订。这些是同一份一手来源的不同版本,不是独立的实验确认。
上文引用的机构页面提供后来的历史背景和当前解释。本文未查阅萨顿与加罗德的原论文;他们的贡献按该研究所时间线所述进行介绍。曾找到摩尔根1911年连锁论文的书目记录,但通过可用的网页阅读工具无法读取全文,因此这里没有将任何结果归因于那篇无法访问的论文。
AI辅助了来源比较、写作及算术核验。本文是一篇明确说明来源与再现局限的历史解释文章,未经独立的人类科学审查。
封面为AI绘制的干燥种子插图。所示例子用于概念说明,不是实验数据,也不是历史标本。